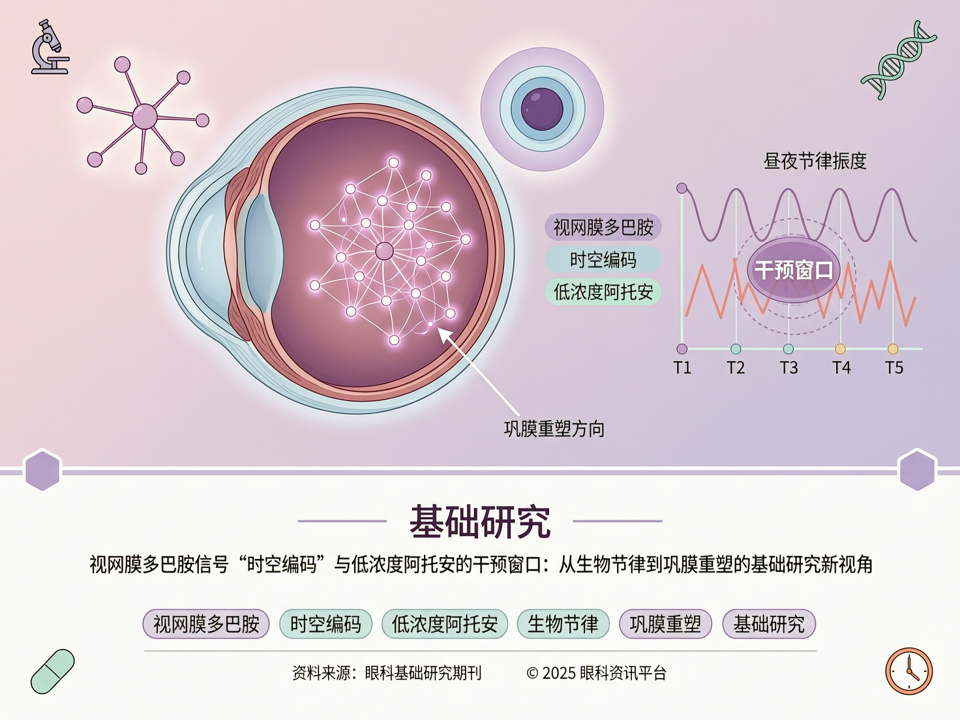
近视已成为全球性公共卫生问题,我国青少年近视率居高不下,防控形势严峻。近年来,低浓度阿托品作为近视干预手段备受关注,但其作用机制仍未完全阐明。基础研究正逐渐揭示,视网膜多巴胺信号在近视发生发展中扮演核心角色,并且其功能具有显著的时空特性。本文聚焦视网膜多巴胺信号的“时空编码”机制,探讨其在户外光照、低浓度阿托品干预中的关键作用,并提出基于生物节律的精准干预新视角。
### 视网膜多巴胺:近视调控的“光信号枢纽”
视网膜多巴胺主要由无长突细胞合成释放,其合成与释放受光照强度、光谱组成和昼夜节律的精细调控。大量研究表明,户外活动可降低近视发生率,其机制之一便是强光刺激视网膜多巴胺分泌增加。多巴胺通过作用于视网膜各类神经元上的受体,调节视网膜-巩膜信号级联,抑制眼轴过度伸长。然而,多巴胺信号并非简单的“开关”,其释放模式、受体分布及下游通路均呈现复杂的时间与空间特征。
### 时空编码:节律性释放与局部微环境
视网膜多巴胺的释放具有昼夜节律性,白天水平较高,夜间降低。这种节律由内在生物钟基因调控,并与光照周期同步。在形觉剥夺或负透镜诱导的近视动物模型中,视网膜多巴胺节律紊乱,白天峰值降低,夜间水平异常。进一步研究发现,多巴胺的作用不仅取决于总量,更取决于其在特定时间窗口与特定视网膜区域的精细释放模式,即“时空编码”。例如,多巴胺D1受体主要分布于双极细胞和神经节细胞,D2受体则更多位于无长突细胞和光感受器。受体亚型的空间分布差异决定了多巴胺对ON/OFF通路的不同调制。
### 低浓度阿托品:调控节律而非单纯抑制?
低浓度阿托品(如0.01%)已被证实可有效延缓近视进展,但其机制长期被认为是睫状肌麻痹或非特异性M受体阻断。然而,最新研究表明,低浓度阿托品可能通过影响视网膜多巴胺系统发挥作用。例如,阿托品可部分恢复形觉剥夺导致的视网膜多巴胺释放节律异常,使白天峰值回升。此外,阿托品还可能调节多巴胺受体的敏感性或影响多巴胺转运体功能,从而放大内源性多巴胺的抑制信号。重要的是,阿托品的干预效果可能也具有时间依赖性:在特定生物节律阶段给药,可能事半功倍。动物实验显示,在光照期前给药比暗期给药更能有效抑制眼轴增长,提示干预效果与多巴胺节律的相位相关。
### 生物节律视角下的精准干预策略
当前近视防控强调增加户外活动,其科学内涵之一便是利用自然光强化视网膜多巴胺的节律性释放。因此,户外活动时间的选择可能比总量更重要:在白天多巴胺峰值敏感期暴露于强光,或许能更有效地稳定多巴胺信号。对于药物干预,联合考虑给药时间与生物节律可能提升疗效并减少副作用。此外,新型光学干预如多焦点软镜、离焦框架镜等,也可能通过改变视网膜光照模式或对比度信号,间接调节多巴胺节律。未来,基于个体生物节律的精准近视防控方案,将成为基础研究向临床转化的重要方向。
### 挑战与展望
尽管证据不断积累,视网膜多巴胺“时空编码”的分子机制仍有许多未解之谜。例如,多巴胺如何与视网膜其他神经调质(如褪黑素、一氧化氮)协同?微环境中的多巴胺浓度梯度如何被精确调控?巩膜作为眼轴增长的最终执行者,其上的多巴胺受体是否存在且功能如何?这些问题需要结合光遗传学、实时成像和单细胞组学等技术进一步探索。
总之,视网膜多巴胺信号的“时空编码”为理解近视发生机制提供了新维度,也为低浓度阿托品的优化应用和基于生物节律的干预策略开辟了新思路。基础研究的深入将推动近视防控从经验性走向精准化。